 购物车


- 首页
- >
- GENESEED
- >
RNA与蛋白如何“对话”?一文梳理RNA-蛋白互作研究技术
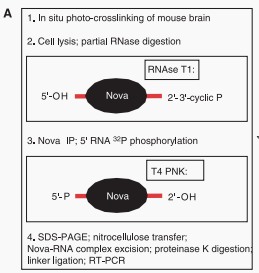
RIP/RIP-seq:从蛋白寻找RNA RIP(RNA Immunoprecipitation,RNA免疫沉淀)是研究RNA-蛋白互作的经典技术,通过特异性抗体富集目标RNA结合蛋白(RBP)及其相关RNA,再对富集的RNA进行分析。 其中,RIP-qPCR适用于候选RNA的富集验证,而RIP-seq结合高通量测序,可在转录组范围内筛选与目标蛋白关联的RNA。 2025年,Guo等[1]利用RIP-seq筛选与RNA结合蛋白IGF2BP2相关的circRNA,鉴定出circRNA-BISC。后续研究发现,BISC可与IGF2BP2结合,并通过影响其介导的c-MYC翻译参与三阴性乳腺癌BET抑制剂耐药调控。这一研究也体现了RIP-seq在从特定RBP出发筛选潜在互作circRNA,并进一步开展功能机制研究中的应用价值。 需要注意的是,RIP检测到的RNA富集并不一定代表RNA与目标蛋白直接结合,也难以精确定位具体的结合位点。 RIP-seq筛选IGF2BP2相关circRNA[1] CLIP:寻找RNA上的蛋白结合位点 CLIP(Cross-linking Immunoprecipitation,交联免疫沉淀)是在RIP基础上发展起来的RNA-蛋白互作研究技术,通过紫外线交联固定直接接触的RNA与蛋白,再结合免疫沉淀和测序,鉴定RNA结合蛋白的靶RNA及其结合区域。 2003年,Ule等[2]利用CLIP研究小鼠脑组织中的Nova-RNA互作,鉴定出34条被多次检出的靶转录本,其中约3/4编码与神经元突触功能相关的蛋白,进一步揭示了Nova参与神经元RNA剪接调控的作用。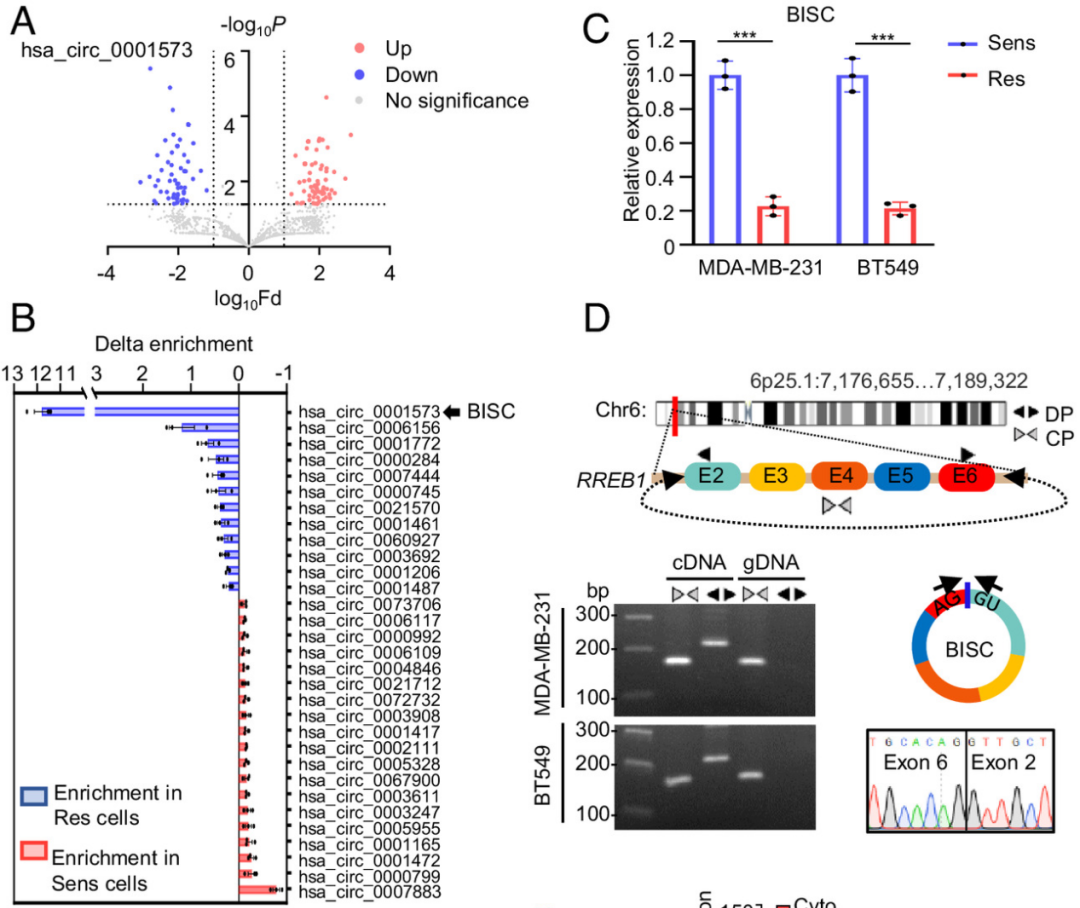
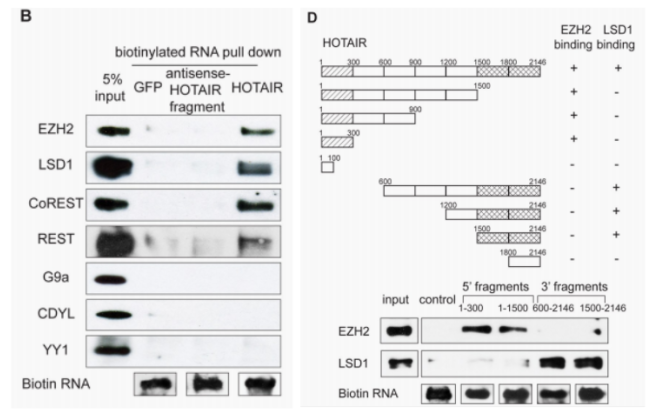
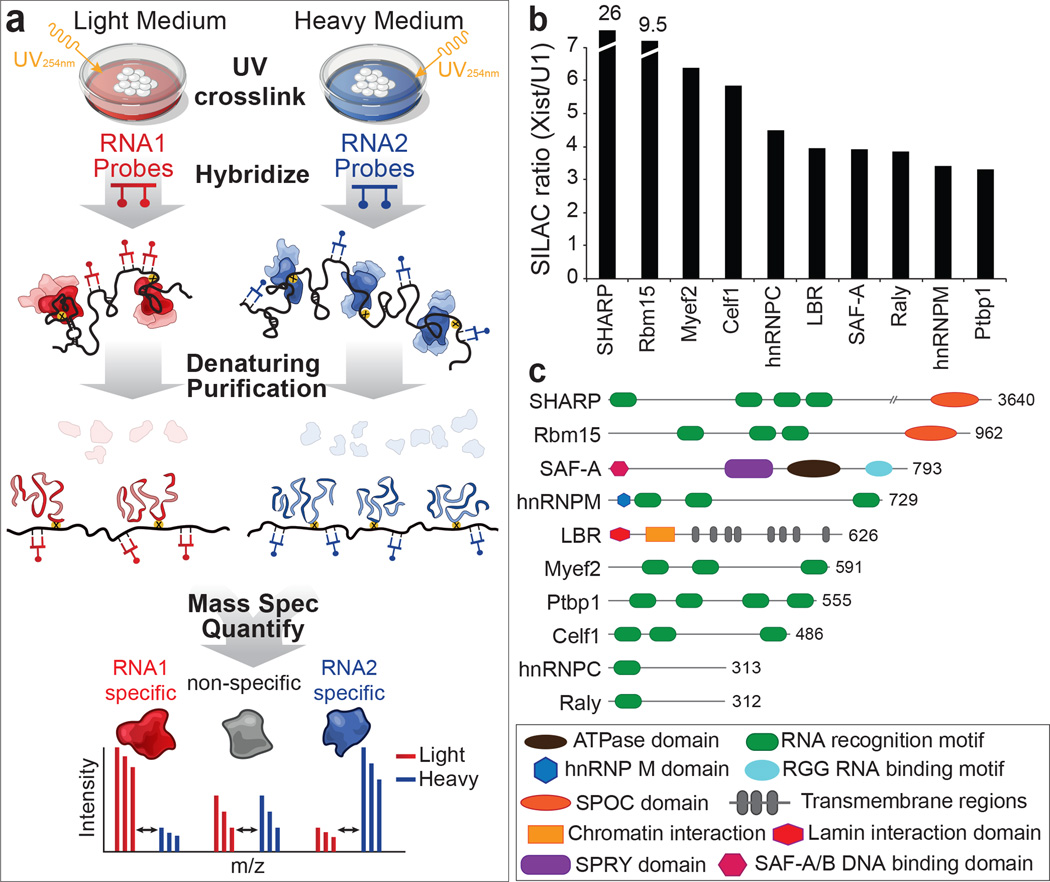
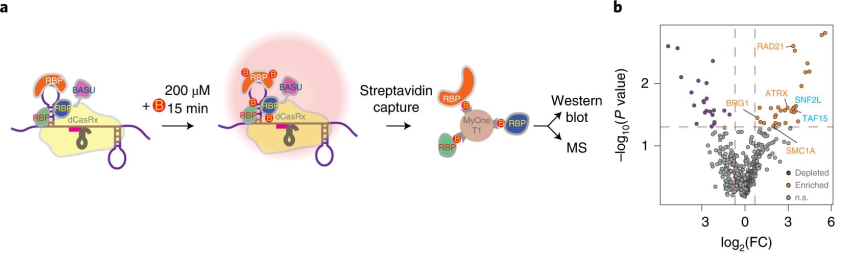
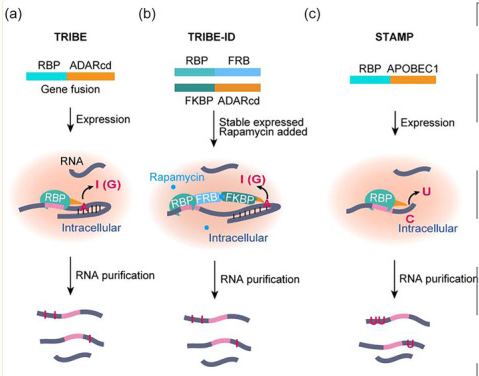
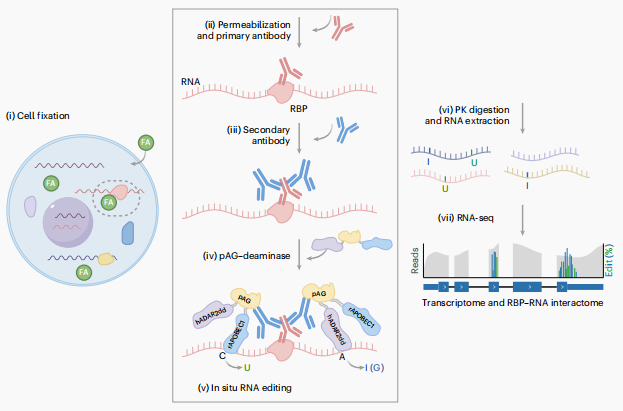
随着测序技术和实验流程的改进,CLIP逐渐发展出多个技术分支: HITS-CLIP: 将CLIP与高通量测序结合,实现转录组范围内的RBP结合区域分析。 PAR-CLIP: 引入光敏核糖核苷类似物,并利用交联产生的特征性碱基转换辅助识别结合位点。 iCLIP: 利用交联位点引起的逆转录终止信息,提高结合位点的定位精度。 eCLIP: 优化文库构建流程并引入匹配的输入对照,提高结合位点鉴定的特异性和可靠性。 不同CLIP技术路线比较[3] RNA pull-down:从RNA寻找蛋白 与RIP和CLIP从蛋白出发寻找RNA不同,RNA pull-down以目标RNA为诱饵,用于筛选其互作蛋白。 实验通常通过体外转录制备生物素标记的RNA,与细胞裂解液孵育后,利用链霉亲和素磁珠富集相关蛋白,再通过Western blot或质谱进行鉴定。 该技术常用于lncRNA、circRNA等功能性RNA的互作研究。2010年,Tsai等[4]利用RNA pull-down等实验发现,HOTAIR的不同区域可分别与PRC2和LSD1/CoREST/REST复合物相互作用,为揭示lncRNA参与表观遗传调控的机制提供了重要线索。 由于实验通常在体外进行,RNA pull-down获得的候选蛋白仍需进一步验证,不能直接认定其在细胞内与目标RNA存在天然的直接结合。 ChIRP-MS与RAP-MS: 捕获内源RNA相关蛋白 与传统RNA pull-down通常使用体外制备的RNA不同,ChIRP-MS和RAP-MS利用互补的核酸探针,在细胞样本中捕获内源RNA及其相关蛋白,再结合质谱进行鉴定。 ChIRP-MS(Chromatin Isolation by RNA Purification coupled with Mass Spectrometry)通常采用化学交联保留RNA相关蛋白复合物,并通过质谱分析其蛋白组成。 RAP-MS(RNA Antisense Purification coupled with Mass Spectrometry)的经典方案则结合紫外线交联与严格的变性洗涤条件,更侧重于鉴定与RNA直接接触的蛋白。 2015年,McHugh等[5]利用RAP-MS鉴定出SHARP、SAF-A和LBR等Xist互作蛋白,并进一步发现SHARP通过HDAC3相关通路参与X染色体的转录沉默,揭示了Xist介导基因沉默的重要机制。 邻近标记:寻找RNA附近的蛋白 传统RNA-蛋白互作研究依赖复合物的富集与纯化,部分弱互作或瞬时互作可能在这一过程中丢失。邻近标记技术则通过将生物素连接酶等标记模块定位至目标RNA附近,在活细胞内标记邻近蛋白,再通过亲和富集和质谱进行鉴定。 RaPID利用BoxB/λN RNA识别系统将标记酶招募至特定RNA附近;CARPID则结合dCasRx RNA靶向系统,无需引入额外的RNA识别序列,即可分析内源RNA的邻近蛋白。 2020年,Yi等[6]利用CARPID研究lncRNA XIST,除已知互作蛋白外,还鉴定出多个此前未被报道的候选蛋白,拓展了对XIST相关蛋白网络的认识。不过,这些候选蛋白是否与XIST直接结合,仍需进一步验证。 CARPID在活细胞中鉴定XIST邻近蛋白[6] TRIBE与STAMP:用RNA编辑记录互作 不同于传统的RNA-蛋白复合物富集方法,TRIBE和STAMP通过RNA编辑酶在目标RNA上留下可被测序识别的编辑信号,从而鉴定RNA结合蛋白的潜在靶RNA。 2016年,McMahon等[7]提出TRIBE(Targets of RNA-binding proteins Identified By Editing),通过将RBP与ADAR编辑酶催化结构域融合,在其邻近RNA上产生A-to-I编辑。研究人员利用该方法鉴定了果蝇特定神经元中的RBP靶RNA,展示了其在少量细胞中开展互作研究的潜力。 2021年,Brannan等[8]提出STAMP(Surveying Targets by APOBEC-Mediated Profiling),采用类似策略,但利用APOBEC1介导C-to-U编辑,并可结合单细胞RNA测序,分析不同细胞中的RBP靶RNA。 MAPIT-seq与POND-seq: 从内源检测到动态监测 近年来,RNA-蛋白互作研究进一步向内源RBP分析和活细胞动态监测等方向拓展,MAPIT-seq与POND-seq分别提供了不同的技术思路。 2025年,Cheng等[10]报道了MAPIT-seq,通过抗体将RNA编辑酶定位至内源RBP附近,利用编辑信号识别其相关RNA,无需构建RBP融合蛋白。该技术还能同步获取基因表达信息,其单细胞版本scMAPIT-seq可用于分析不同细胞状态下的RBP-RNA关联。 2026年,Hu等[11]报道了POND-seq,通过将RBP与可分泌的工程化蛋白纳米笼融合,使其相关RNA被包装并释放至细胞外,再从培养上清中回收测序。该技术可用于监测胞质RBP-RNA互作,研究人员利用其追踪了细胞应激条件下RBP相关RNA的动态变化,实现了对同一细胞群体的重复取样和纵向监测。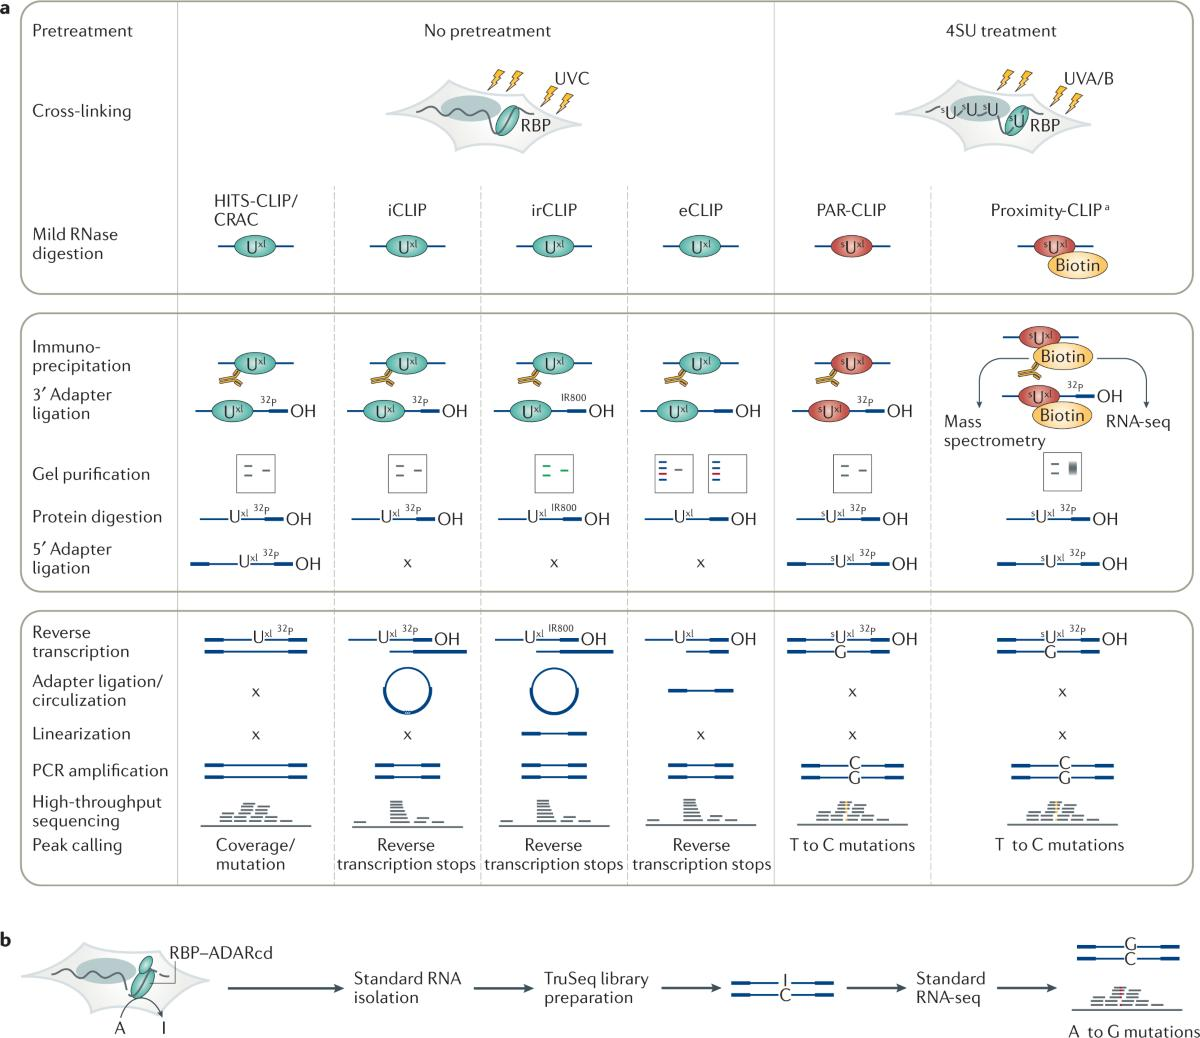
POND-seq技术原理[11] 结语 从互作分子的筛选、结合位点的解析,到活细胞中的动态监测,RNA-蛋白互作研究已形成多种互补的技术路径。但互作关系的发现只是机制研究的起点,后续还需要结合基因表达、蛋白水平及翻译调控等信息,进一步判断这些互作在具体生物学过程中的作用。 吉赛生物提供RIP、RNA pull-down、转录组测序、蛋白质组学、翻译组学及多组学联合分析等技术服务,为RNA-蛋白互作的筛选、验证及功能机制研究提供支持。 参考文献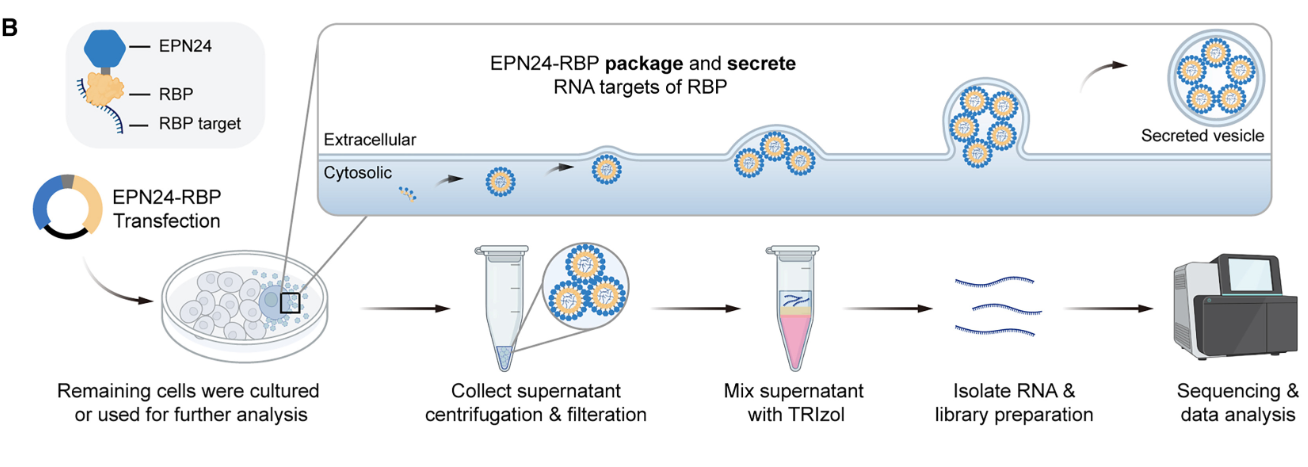

 广州市黄埔区开源大道11号科技企业加速器A区6栋2楼
 geneseed@geneseed.com.cn